Mementomaiores

Mementomaiores

Это профиль ютуб-канала "Помни о предках. Палеонтология", где каждый пикабушник сможет немного узнать о эволюции млекопитающих и их предков! https://youtube.com/@Memento_maiores
Пикабушник
в топе авторов на 345 месте
859 рейтинг 28 подписчиков 5 подписок 7 постов 5 в горячем
17

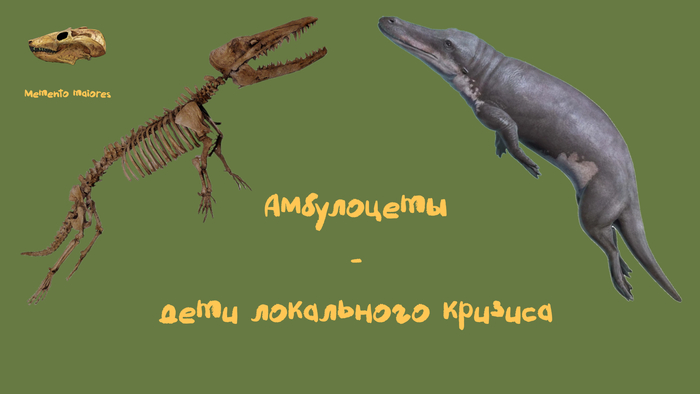
Амбулоцеты - дети локального кризиса⁠⁠

Для тех кто не хочет читать, можно и посмотреть ;))

«Трудные времена создают сильных людей» - нелепица, произнесённая кем-то из древних не имеет ничего общего с текущей реальностью, ведь в трудные времена, сиречь кризисы, большинство людей, как и других живых видов, как правило, попросту вымирает или сильно деградирует, и лишь единицы, хватая фортуну за хвост, приспосабливаются к новым условиям, часто сильно изменяясь, становятся новым населением планеты, далеко не самым сильным, но зато наиболее адаптированным к новым пост-кризисным условиям, а некоторые из них, конечно же, начинают диктовать свои правила игры всем окружающим, такова самая радикальная и прогрессивная часть любой эволюции.

Привет синапсиды, вы на канале «Помни о предках» и меня зовут Даниил. И вот вы спросите, а какой такой кризис наблюдался на третьей от Солнца планете в раннем Эоцене около 50-48 миллионов лет назад? Динозавры уже 15 миллионов лет как вымерли, а до начала Олигоцена ещё как минимум 25 миллионов лет, да термический максимум уже миновал, но пока всё ещё тепло и комфортно. Но по поводу комфорта можно и поспорить, особенно на тогдашней территории нынешнего Пакистана, где медленно, но уверено, в недра Евразии втыкался ещё пока остров – Индостан! А разговор у нас пойдёт об очередной переходной форме в группе китообразных. Амбулоцеты. Поехали!

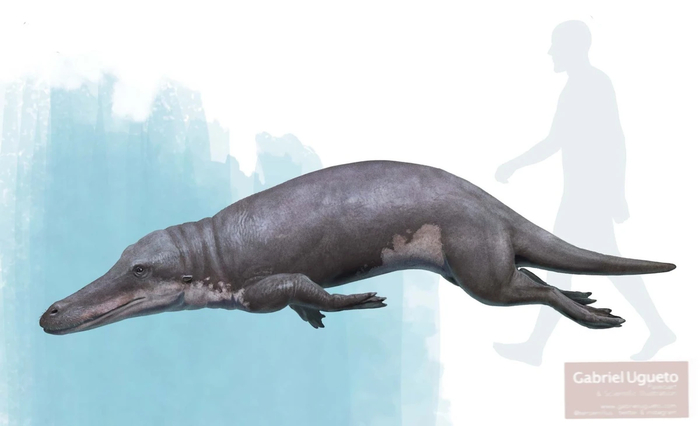
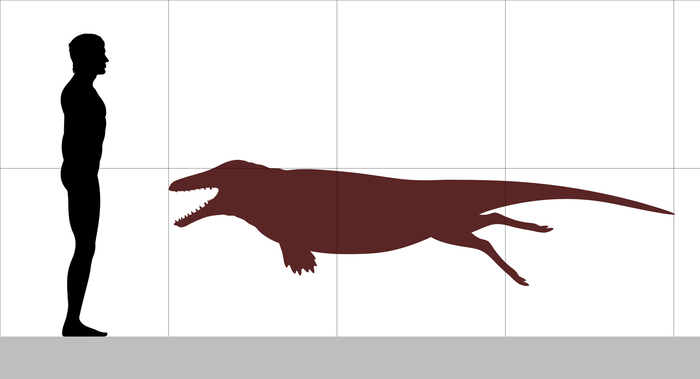
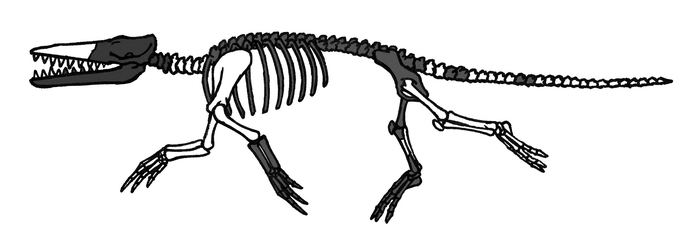
Находка амбулоцета стала результатом экспедиции 1991-92 годов в провинции Пенжаб в Пакистане, усилиями местного исследователя Мухаммада Арифа и американца Ханса Тевиссена. Получив в 91-м году средства от университета Говарда, они преступили к раскопкам холмов Кала Читта в формации Кулдана. Всё началось с фрагмента ребра, а затем был раскопан и оставшийся неполный скелет. Голотип представлен черепом без части морды и единичными зубами, фрагментированными: позвоночным столбом, грудной клеткой, тазом, передними и задними конечностями, с отсутствием хвоста, крестца и части шейных позвонков. В дальнейшем, были найдены и другие экземпляры амбулоцета, в том числе, спорный образец из подножия Гималаев, с наиболее ранней датировкой около 53 миллионов лет назад. Голотип был датирован ранним Люцетским ярусом эоцена, около 48-47 миллионов лет назад. Физиология находки представляла собой сходное с пакицетом амфибиойдное млекопитающее, а строение зубов типичным для китообразных, за что находка и получила название Амбулоцетус Натанс (Ambulocetus natans), то есть «ходячий кит плавающий», ох уж эти палеонтологические наименования… Общая длина амбулоцета оценивается в 3-4 метра, с массой около трёхсот килограмм.

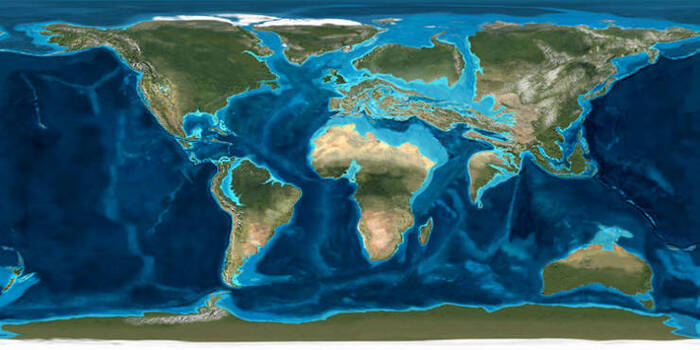
Но прежде чем начать описывать скелет, давайте пару слов о локальном кризисе, что упомянут ранее. Около 55 миллионов лет назад, в самом начале Эоцена, остров Индостан уже доплыл до Евразии, получил сухопутный коридор с континентом в районе нынешних Бангладеш и Мьянмы, и начал приподнимать континентальную кору, формируя Гималаи, Гиндукуш и Каракорум, попутно сплющив некогда великий океан Тетис до нескольких заболоченных мангровых морей, существенно изменив климатическую обстановку и поломав пищевые цепи, из-за чего, некоторые копытные были вынуждены приспосабливаться к полуводному, а затем и водному образу жизни, и вот за каких-то 3-5 миллионов лет, бывшие родственники мезонихий эволюционировали в китообразных со всеми вытекающими.

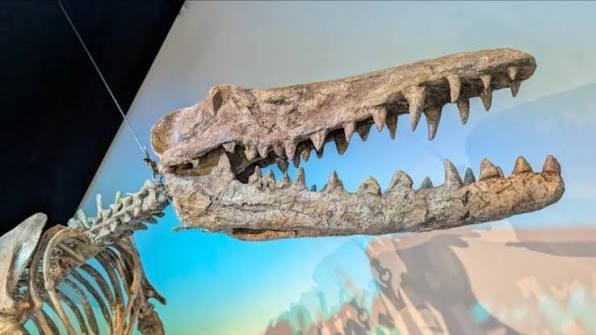
Начнём с краниального скелета! Череп мощный, крупный но вытянутый в районе морды. Сама морда сильно сжата с краёв, премаксилла выпирает кпереди, а нозальная кость находится кзади от неё. Ноздри расположены дорсально, то есть к верху, что делает реконструкции амбуоцета с собачьим носом, логически неверными, а таковых много. Нижняя челюсть так же вытянута и сжата медиально, тем самым намекая на основную рыбоядную диету амбулоцетов, наподобие современных гавиаловых крокодилов. Зубы, в значительной степени стремятся к монодонтии. Резцов по три пары на обеих челюстях, все выражено клыкообразные, клыки больших размеров, по паре на каждой челюсти. Две пары премоляров на верхней челюсти так же напоминают клыки по строению, остальные пермоляры и моляры имеют слабую дифференциацию и треугольную форму, что так же может говорить о перестроении функций зубов, от жевания, к надёжному захвату, и как следствие, к рыбоядности. Височные окна больших размеров, с редуцированной заглазничной перегородкой, крупным саггитальным гребнем и скруглённой каудальной кромкой теменной кости, что говорит о мощных челюстных мышцах и их надёжном креплении, подтверждающем гипотезу рыбоядности. Однако, небольшие глазницы, расположенные кверху, наподобие таковых у крокодилов, могут говорить в пользу засадной охоты на мелководье на наземных и надводных животных, где амбулоцет держал всё тело в воде, за исключением глаз и ноздрей.

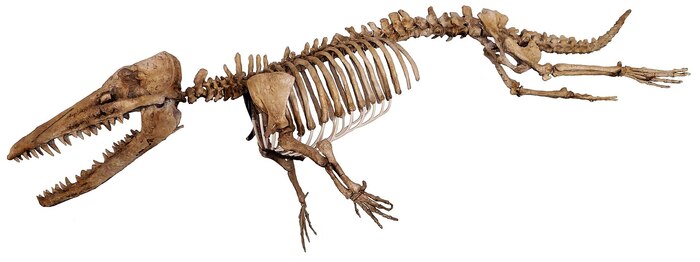
Посткраниальный скелет схож с таковым у пакицетовых, за несколькими оригинальными различиями, которые я постараюсь описать. Сам скелет чуть относительно более массивен, чем у пакицетов, но часть костей, напротив, эволюционировала в сторону миниатюризации, как позвоночный столб, с менее крупными остистыми отростками и кости таза, сравнительно меньших размеров у этих двух групп ранних китообразных. Что хорошо укладывается в рамки эволюционного процесса по освоению водной стихии, ведь согласно работе 2016 года, амбулоцеты были полностью адаптированы к жизни в воде.

Грудная клетка больших размеров, бочкообразная, со значительным объёмом лёгких, что необходимо при длительном нырянии и задержке дыхания. Лопатки массивные, с крупной вертлужной впадиной обращённой книзу. Плечевая кость мощная, сжатая с краёв и изогнутая, что предполагает значительные нагрузки. Локтевой выступ локтевой же кости, занимает треть от её общей длины, что говорит о наличие мощнейшего трицепса и активном применении передних конечностей для гребли. Задние конечности вдвое длиннее передних, но в тоже время, относительно менее массивные, имеют выраженный пяточный выступ, необходимый при отталкивании, как на суше, так и в воде. Пальцы на обеих парах конечностей выражено, удлинены, с небольшими копытцами, вероятно, имели межфаланговые перепонки. Хвостовой отдел изучен слабо, ввиду фрагментарности находок. Таким образом, мы можем наблюдать одного из многих китообразных, уже окончательно освоившего воду, но ещё проявлявшего признаки наземного животного, жившего на территории современного Пакистана, среди многих других ему подобных предковых родственников нынешних китов.

Вот таким представляется нам амбулоцет, с вероятно смешанным рационом, но с упором на рыбоядность, чуть более крупным и мощным чем пакицетовые родственники. А на сегодня на этом и закончим, подписывайтесь на канал, ставьте лайки и пишите комментарии, по возможности поддержите канал на Бусти, постарайтесь приспособится к текущим изменениям и конечно же, помните о предках.

Видеоверсию данного поста, а так же многое другое о палеонтологии млекопитающих и не только можно посмотреть на канале - https://www.youtube.com/@Memento_maiores

Показать полностью 8
23

Чженхеотериды - млекопитающие из Ляонина⁠⁠

Эволюция млекопитающих, как дисциплина, является крайне сложной и малоизученной, в отличие от тех же динозавров, с их безусловными проблемами и недосказанностью. Мы знаем что ближайшие предки териевых млекопитающих жили ещё в Триасе, а вот, как и от кого произошли однопроходные, несмотря на наличие массы кладограмм, до сих пор остаётся загадкой, а ещё ведь есть всякие докодонты, технотерии и прочие эухарамииды, которых обозревать не переобозревать…

Но давайте для начала разберёмся с симметродонтами, названными как – симметричные зубы, из-за строения моляров, в горизонтальном сечении напоминающих равносторонний треугольник, что, вроде как, симметрично. Однако как только до исследователей начало доходить, что основываться только на морфологии зубов, которых конечно максимальное количество в находках, уже не комильфо, ведь есть и другие признаки, да и сами зубы товар крайне неопределённый и легко изменяющийся в процессе эволюции, симетродонты канули в лету, жаль, что только до сих пор ещё не для всех. Но кюнеотерий им судья, а мы для начала посмотрим на зверька давшего имя таксону.

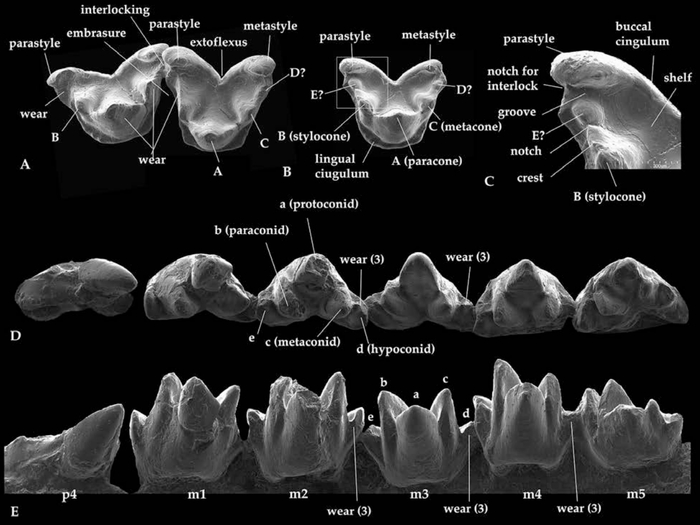
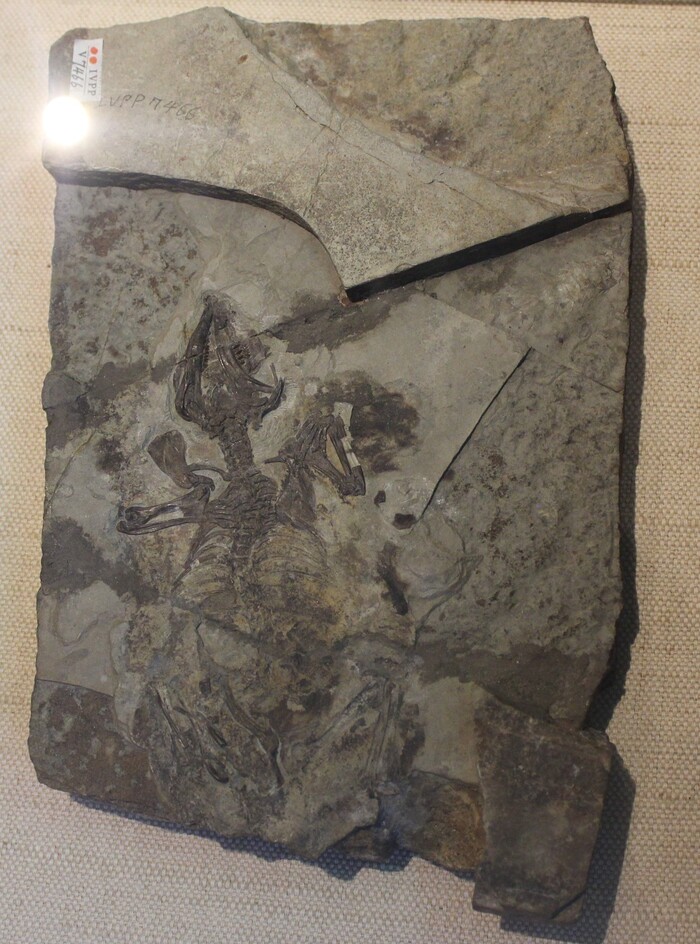
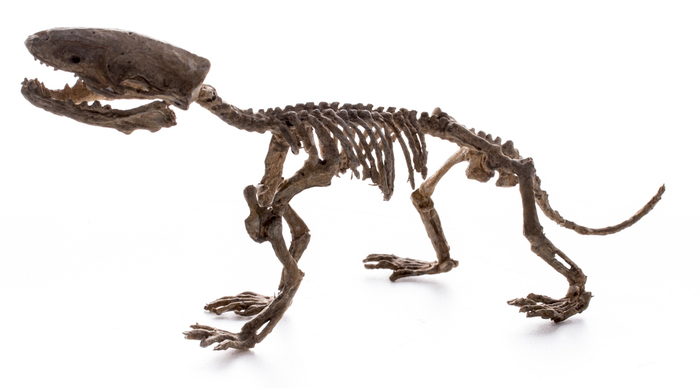
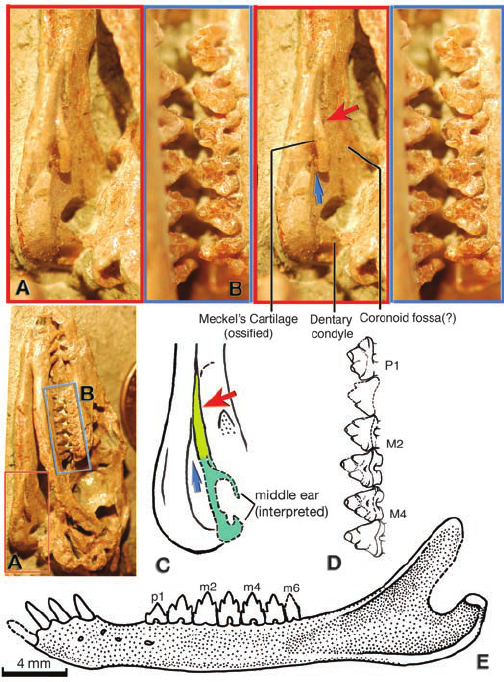
Чженхеотерий квинкекуспиденс (Zhangheotherium quinquecuspidens) – название дано по местонахождению и пяти бугоркам на молярах. Голотип состоит из фрагментированных, но достаточно хорошо сохранившихся краниальном и посткраниальном скелетах, описанных в 1997 году китайско-американскими исследователями, да, такое тоже бывало и не раз. Длина около 15 сантиметров, с неизвестной массой. Краниальный скелет дорсально впечатан в породу, поэтому к исследованию предлагается только челюстная часть и основание черепа. Зубная формула следующая: три пары резцов, одна – клыков и две пары премоляров на обеих челюстях, пять пар моляров на верхней, и шесть на нижней челюсти. Резцы конусообразные, направлены кпереди, особенно первая пара нижней челюсти. Клыки в значительной степени редуцированы, премоляры пирамидообразные, двухкоренные, имеют признаки моляризации, моляры типичные для «симетродонтов», образуют равносторонний треугольник, имеют пять вершин и ещё  не типичный, но слабовыраженный таланоид. Строение коренных зубов таково, что они входят в промежутки аналогов на ответной челюсти, таким образом, достигается окклюзия, однако подобный тип смыкания способен только к прокалыванию и раздавливанию пищи, но не к срезанию и перетиранию. Зубная кость вытянута, симфиз, не сросшийся, и вероятно мог быть подвижным при жизни, мыщелковый отросток изогнут к верху, венечный отросток наклонён кзади и не имеет углового отростка.

У чженхеотерия имеется окостеневший меккелев хрящ, что свойственно для нетериевых млекопитающих, однако строение чешуйчатой кости, в частности челюстного сустава и примыкающих областей, напоминают таковые у настоящих териев, как сумчатых, так и плацентарных. Мыс, в котором располагалась улитка, имеет пальцеобразную форму, что говорит о том, что улитка ещё не была свёрнута, но забарабанная и над барабанная выемки, соответствуют таковым у более продвинутых млекопитающих. Таким образом, наш герой имеет как ряд примитивных, так и ряд прогрессивных признаков, и это только в черепе.

Посткраниальный скелет состоит из 7 шейных и 13 грудных позвонков, поясничные, крестцовые и хвостовые позвонки фрагментарны и представлены отпечатками. Имеются несросшиеся шейные рёбра, напоминающие таковые у морганукодонтов и мультитуберкулят, грудинные рёбра крепкие и краниально-каудально сжаты. Имеется межключичная V-образная перемычка, перекрывающая частично грудину снизу и переходящая в грудинный киль. Ключица имеет подвижное сочленение с межклюцией и акромионом лопатки, что наблюдается у многобугорчатых. Строение ключицы и лопатки таково, что позволяют ключице выступать в качестве шарнира для более подвижного движения лопатки, как у современных опоссумов. Плечевая кость крепкая, имеет гребень и скручивание, угол между концами составляет примерно 30 градусов, что немногим меньше чем у более близких к териям млекопитающих, как например, винселест. Передние конечности, вероятно, имели примитивное расставленное в стороны, расположение. Локтевой сустав соответствует таковому у терий, унаследованный от более примитивных млекопитающих. Тазовые кости тонкие, подвздошная длинная и имеет форму стержня, в трое длиннее седалищной, судя по отпечаткам седалищно-лобковой пластины, таз был по видимому не глубоким. Головка бедренной кости отделена от стержня выраженной шейкой. Имеется крупный бугорок на пяточной кости, а её таранный отросток соприкасается с малоберцовой костью, что является плезиаморфным, то есть, групповым  признаком, унаследованным от общего предка, для всех териев.

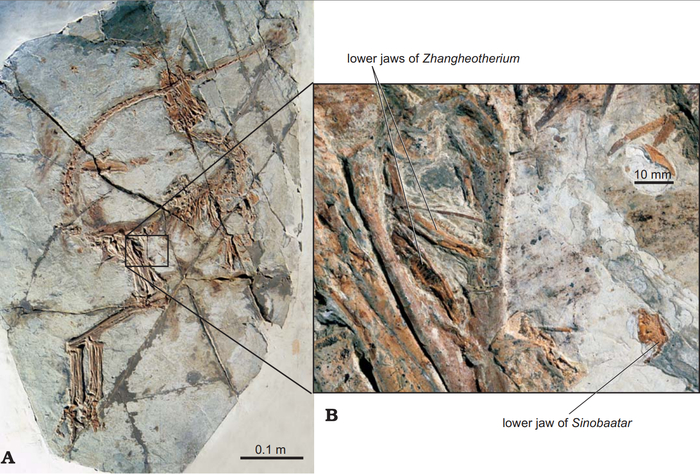
Таким образом, чженхеотерий, совмещает в своей морфологии, признаки как достаточно примитивных млекопитающих, как морганукодонты, так и атрибуты вполне современных млекопитающих, что с большей уверенностью указывает на то, что данная клада размещена правомерно у ствола териевых млекопитающих. К сожалению, датировка довольно размыта, от конца Юры, до начала Мелового периода. Само животное, вероятно, имело низкую внутривидовую агрессию и питалось мягкотелыми насекомыми. А вот самим чженхеотерием питались некрупные тирранозавриды, что известно по находкам нижней челюсти млекопитающего в районе желудка динозавра.

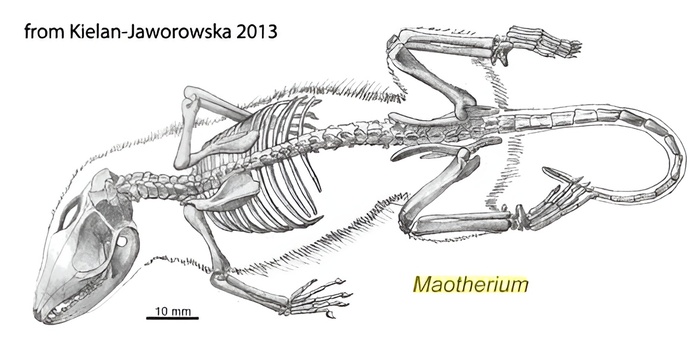
И следующим нашим героем будет маотерий синенсис (Maotherium sinensis), наименование которого можно расшифровать как шерстяной зверь из Китая, но мы-то все знаем, в честь какого Мао его вероятней всего назвали! Описанный Гильермо Рожером, в 2003 году, всё из тех же слоёв провинции Ляонин. И если посткраниальный скелет маотерия, плюс-минус соответствует таковому у чженхеотерия, то вот череп имеет несколько значимых отличий, а так же, мы можем наблюдать один из немногих сохранившихся отпечатков покровов мезозойских млекопитающих. Зубная формула имеет следующие параметры: по три пары резцов и паре клыков на обеих челюстях, две пары премоляров и три моляров для верхней, и три пары премоляров и шесть пар моляров для нижней челюсти. Форма зубов, более продвинутая по сравнению таковой у чженхеотерия, имеет непрерывную режущую кромку между вершинами и более мощный таланоид. Наблюдается качественный износ некоторых зубов. Суставной отросток зубной кости загнут кпереди, суставная впадина узкая и удлинённая. Предполагается, что эти признаки могут говорить о питании маотерия более грубой пищей, например жесткокрылыми насекомыми. Строение черепа примитивно, мозговая полость и другие кости напоминают таковые у морганукодонтов, что говорит в пользу увеличения мозга у более развитых млекопитающих. Интересен так же сохранившийся отпечаток шерсти, располагающийся практически по всему контуру тела, с присутствием, как покровных волос, так и подшерстка, с краниально-каудальным расположением роста волос, то есть спереди кзади.

Так же, уникальным для маотерия отличием, будет предположительное крепление кости среднего уха – молоточка, к окостеневшему меккелеву хрящу, что является переходным признаком между маммалиаморфами и ранними териями. А мы переходим к последнему на сегодня, млекопитающему из Ляонина.

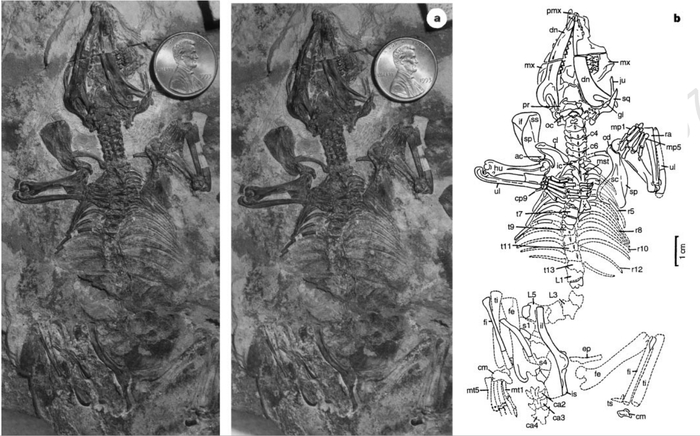
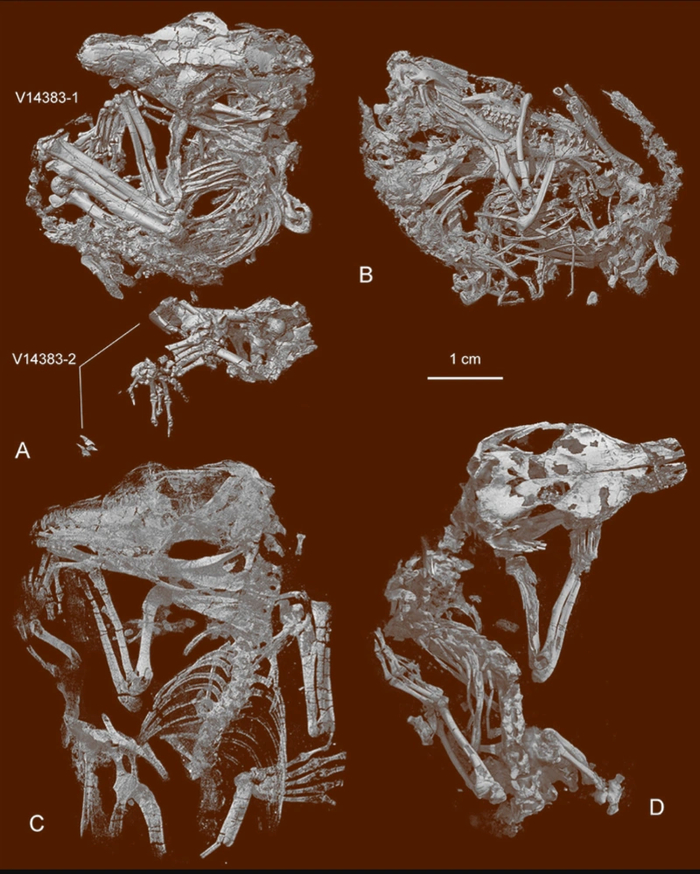
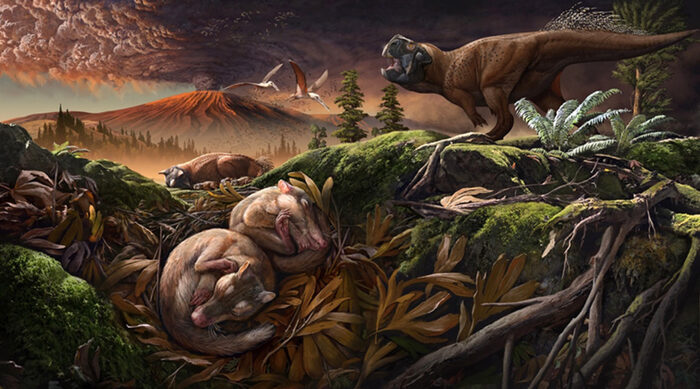
Ориголест лии (Origolestes lii), в данном случае без перевода, так как по находке имеется буквально одна статья, пусть и обширная, но без каких либо пояснений по данному поводу. Зато это первое млекопитающее, представленное полностью в 3Д формате, благодаря качественному сканированию находки в компьютерном томографе с высоким разрешением. Голотип представлен почти полным скелетом, который перед захоронением свернулся калачиком, наподобие того как это делают современные домашние кошки. Так же, рядом с голотипом представлен фрагмент другого скелета этого же вида, что может указывать на совместное проживание особей в одном жилище, про внутривидовую агрессию, точнее предполагаемое её отсутствие у чжанхеотерид, я говорил ранее. Если не касаться строения среднего уха, мимимишной реконструкции и просто более качественных изображений, морфология ориголеста, мало чем отличается от маотерия и чженхеотерия.  Но вот про ухо пару слов сказать стоит, а собственно, тот самый молоточек, в отличие от маотерия, уже независим от меккелевой борозды, и как следствие не примыкает к нижней челюсти, таким образом, мы можем наблюдать первое млекопитающее, с ещё примитивным, но уже современным строением среднего уха. По всем же остальным параметром, это типичный чженхеотерид.

Вот так благодаря хорошей сохранности в слоях провинции Ляонин и конечно качественной работе китайских, а так же американских палеонтологов, мы можем наблюдать как проходила эволюция у стволовых териевых млекопитающих, особенно по таким важным признакам как строение внутреннего уха.

Видеоверсию данного поста, а так же многое другое о палеонтологии млекопитающих и не только можно посмотреть на канале - https://www.youtube.com/@Memento_maiores

Показать полностью 10 1
96

Эволюция носа у млекопитающих - история одного шнобеля⁠⁠

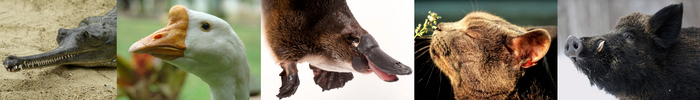
Практически всем русскоговорящим людям, а думаю и не только им, знакомы такое народное творчество как пословицы и поговорки, и в некоторых из них, речь часто заходит о таком анатомическом образовании на лице или морде, как нос. Например – «не суй нос не в своё дело», «нос – через реку перерос», «любопытной Варваре, на базаре нос оторвали», так же, иногда употребляют более грубую форму – замарать или воротить рыло. Во всех приведённых мною выражениях, нос или его аналог рыло, представлены как нечто выпирающее относительно лица, что собственно так и есть, и даже если мы прекратим разглядывать человеческие носы, а перейдём к братьям нашим меньшим, например собакам или кошкам, да даже к свиньям, бурундукам, кенгуру и тем более слонам, во всех случаях нос, так или иначе, будет находиться чуть впереди, обладателя этого носа! Но если пойти чуть дальше и посмотреть на птиц, змей, крокодилов, лягушек и даже утконоса, то случится чудо, и выпирать всегда будет верхняя челюсть, а нос будет расположен немного позади.

Привет синапсиды, меня зовут  Даниил, и я веду канал «Помни о предках. Палеонтология», поэтому для тех, кто не хочет много читать, внизу будет прикреплён ролик на эту же тему, а для любителей длиннопостов,  я разберу небольшую, но очень интересную статью, опубликованную 2 ноября 2022 года в журнале «Работы национальной академии наук» или просто PNAS. В этом труде достаточно подробно анализируется выше озвученный парадокс, ну а точнее, как же терии или живородящие млекопитающие, дошли до жизни такой, да ещё и с выпирающим шнобелем! Для желающих почитать оригинал, будьте готовы к ГМО-эмбрионам, которых потом будут травить циклопамином  мерзкие учёнусы! Ну а для остальных, пожалуй, начнём.

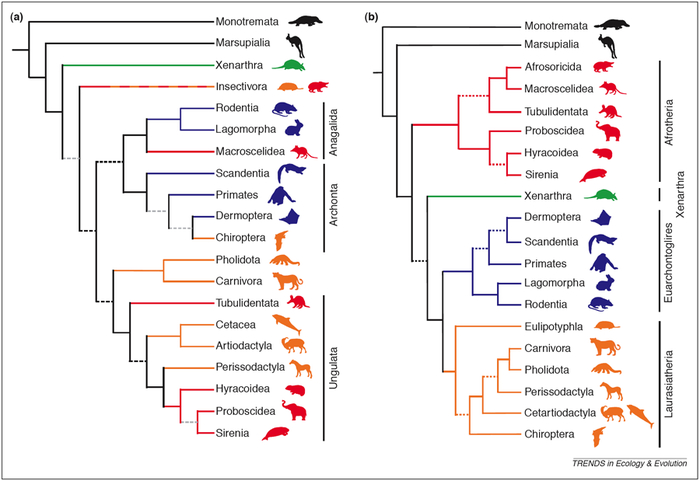
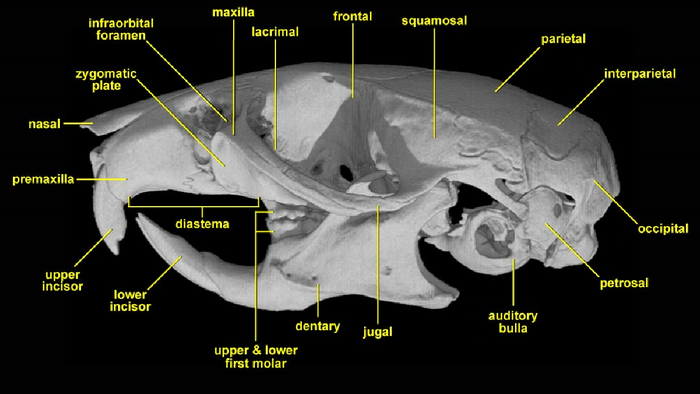
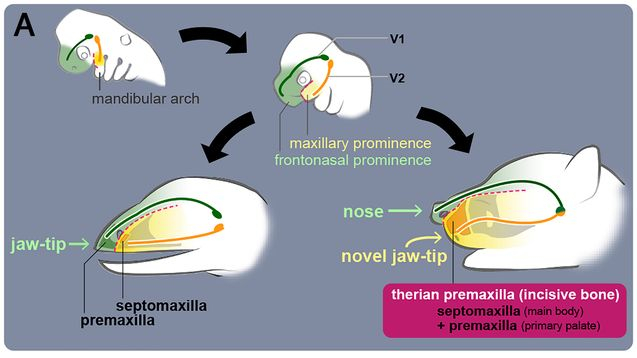
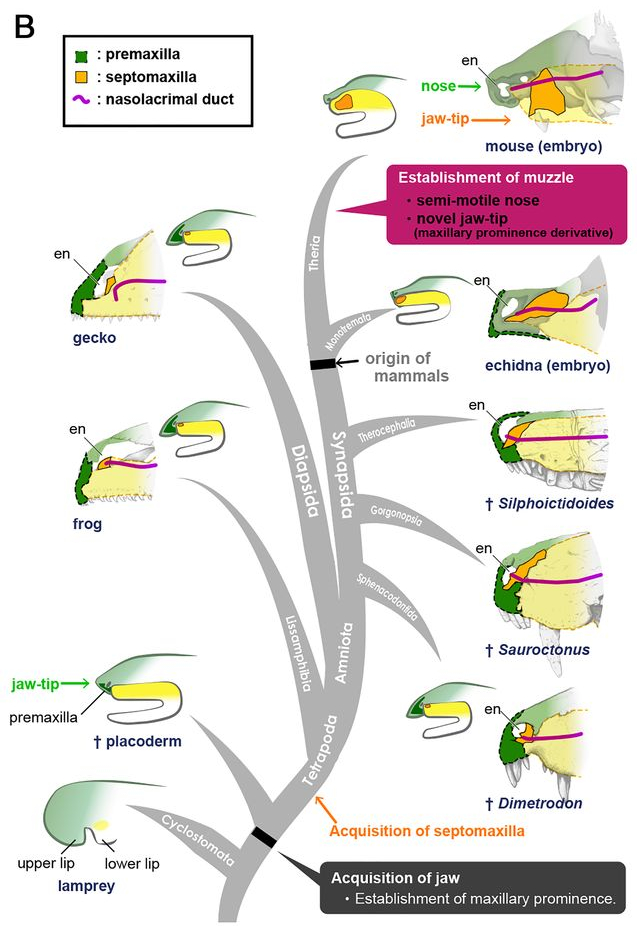
Итак, весь смысл в том, что у териев, то есть плацентарных и сумчатых млекопитающих, строение скелета черепа таково, что премаксилла или верхнечелюстная кость, смещена несколько вниз, а над ней располагается назальная или носовая кость, которая, например, у всех завропсид находится за премаксиллой, а у монотремат, они же однопроходные, мы можем наблюдать некий переходный вариант, но что это я, разве это доказательство эволюции, гораздо проще объяснить создание всего сущего сверхсуществом за 6 дней! Но, не будем о грустном. Статью можно поделить на две части, в первой проводится тот самый бесчеловечный опыт с эмбрионами, правда не человеческими, а лягушки, геккона, ехидны и мыши, а во второй части, сравниваются эволюционные изменения носовой части синапсид, как вымерших, так и ныне живущих. Начнём естественно с первой!

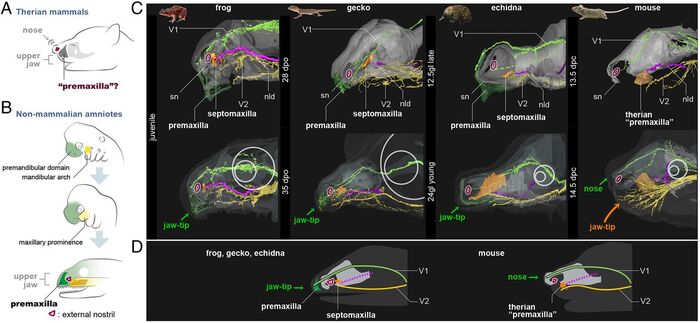
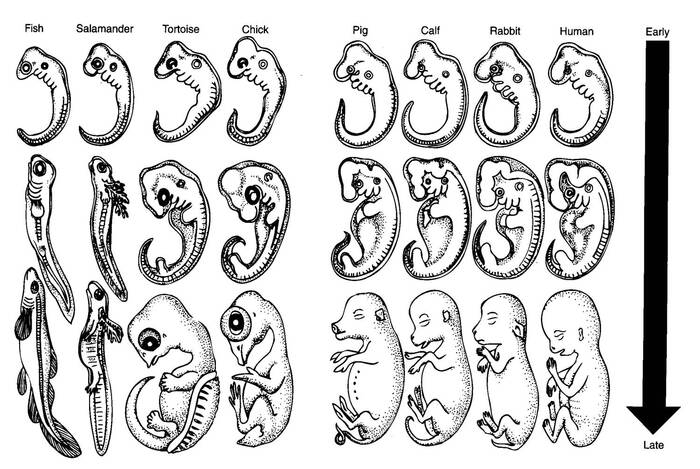
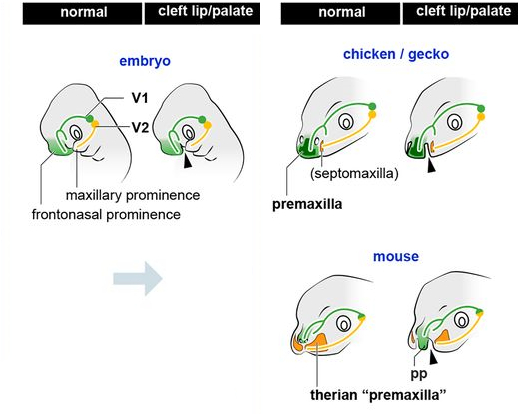
Собственно, для людей интересующихся эволюционной изменчивостью и происхождением видов, не будет секретом тот факт, что морфология эмбрионов тетрапод, весьма сходна до определённого периода, когда начнут проявляться специфические особенности анатомии конкретного вида, что является одним из доказательств эволюции. Именно поэтому учёные в составе Хироки Хигасямы, Тацуя Хиросавы, Ингмара Вернебурга и других, решили начать с начала, и сравнить анатомию эмбрионов. В результате были получены следующие данные: у зародышей лягушки, гекона и ехидны, премаксилла окостеневает медиально, то есть с середины, у первых двух рост наблюдается на протяжении всего времени, у монотремат же, рост замедляется, кость становится сравнительно меньше, а оставшееся пространство замещается верхнечелюстной перегородкой, а у зародыша мыши, окостенение происходит снаружи, относительно носовых капсул. Так же, у первой тройки верхнечелюстная кость возникает в области глазного нерва, а у териев, она развивается в области верхнечелюстного нерва.  Таким образом, учёные заключают, что предчелюстная кость териевых млекопитающих, может быть сравнима с нетериальной перегородкой верхней челюсти, которая у териев отсутствует.

Чтобы понять какой из лицевых зачатков даёт начало  верхнечелюстной кости и носовой перегородке у разных амниот, исследователи сравнили куриный и мышиный эмбрионы, искусственно замедлив развитие морды и создав условия для появления «заячьей губы» или расщеплённых губы и нёба, с помощью циклопамина, что позволяет ингибировать мезенхимальную пролиферацию нервного гребня, то есть запустить процесс увеличения числа мазинхимальных клеток, из которых потом вырастут соединительные и мышечные ткани, а так же некоторые клетки крови. На поздних стадиях развития глотки, слияние лобно-носовых и верхнечелюстных выступов, успешно подавлялось у обеих эмбрионов, так же контрольным экземпляром служил эмбрион геккона со спонтанно расщепившимся нёбом.

Расщелины у этих трёх животных сохранялись в одном и том же положении на протяжении всего развития, деля морду на три части: две боковые части верхнечелюстного выступа и среднюю лобно-носовую часть, где у эмбрионов геккона и курицы разделение совпадало, имея шов между верхнечелюстной костью и верхней челюстью, а перегородка верхней челюсти была обнаружена в области верхнечелюстного отростка, когда как у мышиного эмбриона верхняя челюсть также была разделена на медиальную и латеральную области, но в отличие от курицы и геккона, основное тело предчелюстной кости  было обнаружено на боковой стороне расщелины. Таким образом, премаксилла у териев не является полностью лобно-носовой производной, а основная её часть, вероятно, происходит от верхнечелюстной перегородки.

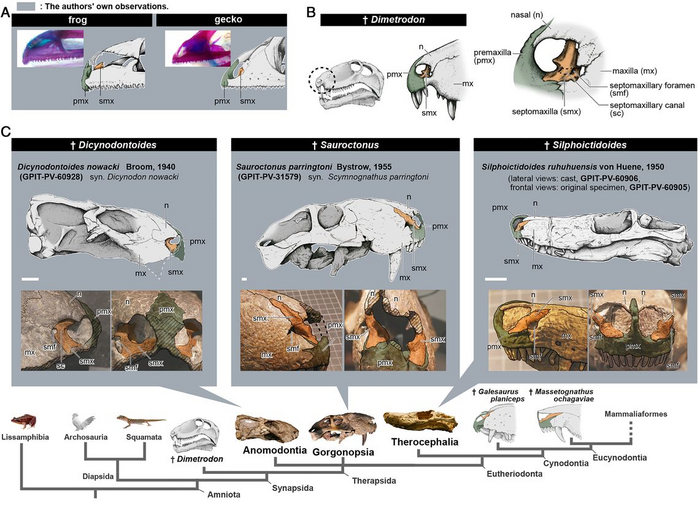
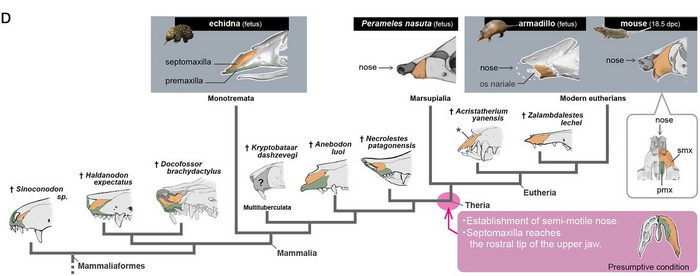
Во второй части работы, авторы сравнили окаменелости таких животных как: диметродон, дицинодонт, завроктон и сильфиктидоид, с представителями современных териев, как броненосец и мышь, естественно в области носоглотки. Основное внимание было обращено на септомаксиллу или верхнечелюстную перегородку, о которой говорилось в первой части работы. Такие перегородки наблюдаются как у молодых гекконов и лягушек, так и у базальных синапсид, представляя собой небольшой костный элемент в носовом отверстии пронизанный носо-слёзными протоками. У развитых синапсид, более близких к маммалиям как горгонопс завроктон и тероцефал сильфиктидоид , внешняя часть верхнечелюстной перегородки начала переходить на боковую поверхность морды, а предчелюстная кость и перегородка оставались разделёнными у большинства цинодонтов и не териевых млекопитающих. И только у териев, наблюдается утрата внутренней части предчелюстной кости с появлением единственного носового отверстия в черепе. Так как терианская премаксилла присутствует как у метатериев, так и у эутериев, то есть сумчатых и плацентарных, слияние перегородки и предчелюстной кости, должно было произойти у их общего предка. Возможно, это уже лично мои мысли, не последнюю роль здесь мог сыграть вирус, сделавших яйцекладущих млекопитающих – живородящими.

Таким образом, авторы продвигаются в давней загадке сравнительной анатомии, где ростральная или передняя часть верхней челюсти, обеспечивается разными нервными ветвями у териев и всех остальных тетрапод. Данное исследование показывает, что предчелюстная кость не представлена в передней части верхней челюсти не териевых четвероногих, а у териев образует подвижный нос, выдающийся наиболее вперёд относительно всего остального тела.

Так же, в ходе эволюции, создаётся териевая конфигурация верхней челюсти, с ростральным расположением вибрисов, что способствует наиболее быстрому получению информации посредством осязания. Думаю что через некоторое время, данный маркер можно будет использовать как ещё один признак для отличия териев от всех остальных, наряду с размером мозга и строением среднего уха.

Вот так териевые млекопитающие оказались с носом, что безусловно дало им ряд преимуществ, перед всеми остальными тетраподами и вероятно сыграло свою роль около 65 миллионов лет назад. Ниже приведена ссылка на статью и оригинальный ролик на Ютубе, буду благодарен за его просмотр и оценку! Да скорого, мои синапсидные бро!

Оригинал статьи - https://www.pnas.org/doi/abs/10.1073/pnas.2111876118

Показать полностью 10 1
474

Живорождение у синапсид⁠⁠

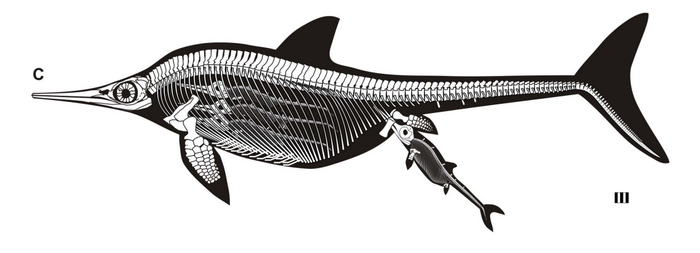
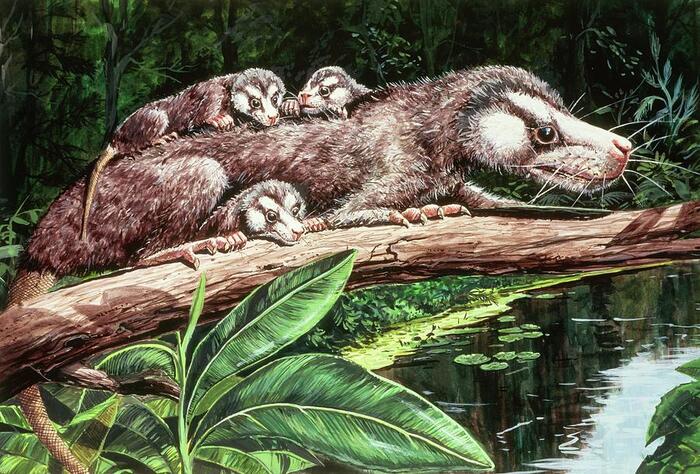
Такой процесс появления потомства на свет как вивипарность или живорождение, возник независимо у более 150 видов позвоночных: сто пятнадцать раз у завропсид, тринадцать раз у костистых рыб, девять раз у хрящевых рыб, восемь раз у земноводных и один раз у плакодерм. Но самыми известными представителями живородящих являются, конечно же, маммальные синапсиды или млекопитающие, к коим относимся и мы с вами.

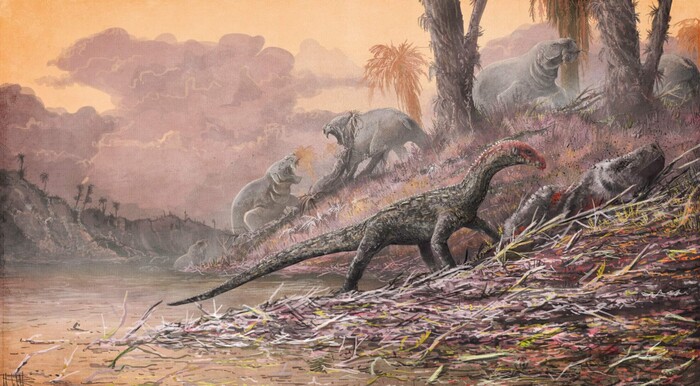
Вивипарность у синапсид появляется примерно 160-200 миллионов лет назад, по оценкам различных исследователей, но наиболее новые работы, всё больше отдаляют это событие к границе Триасового и Юрского периодов. Эта датировка примечательна тем, что примерно в это же время произошло одно из самых массовых вымираний Фанерозоя – Триасово-Юрское, стёршее со страниц палеонтологической летописи последних конодонтов, представлявших на тот момент около 20% морской фауны, многие виды амфибий, одну из доминирующих хищных групп архозавров - орнитозухий, тем самым высвободив пищевую нишу для динозавров, которые будут править миром ещё 135 миллионов лет, и остатки терапсид, за исключением недавно появившихся млекопитающих и, по сути реликтовых, цинодонтов и дицинодонтов.

Стоит сказать, что разделение поздних синапсид на млекопитающих и цинодонтов, достаточно условно, и определяется в основном по строению костей внутреннего уха и размеру мозга, с развитием его зон, отвечающим за обоняние, осязание и координации движений, так как с отпечатками мягких тканей синапсид у нас совсем не густо, как и с находками их яиц, определить способы выкармливания потомства не представляется возможным, но если исходить из гипотезы о том, что яйца синапсид были покрыты мягкой оболочкой как у современных однопроходных, то забота о потомстве в целом, и выкармливание с помощью видоизменившихся в молочные, потовых желёз, вероятно возникших у синапсид с появлением волосяного покрова, представляется наиболее вероятным вариантом. Именно поэтому живородящие млекопитающие, появляются на филогенетическом древе практически сразу после выделения маммалиаморф в отдельную группу, около 220 миллионов лет назад, в конце Триассового периода.

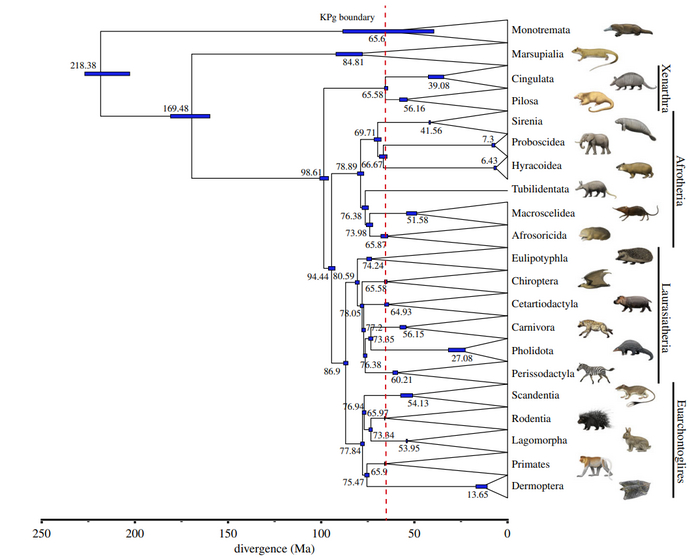
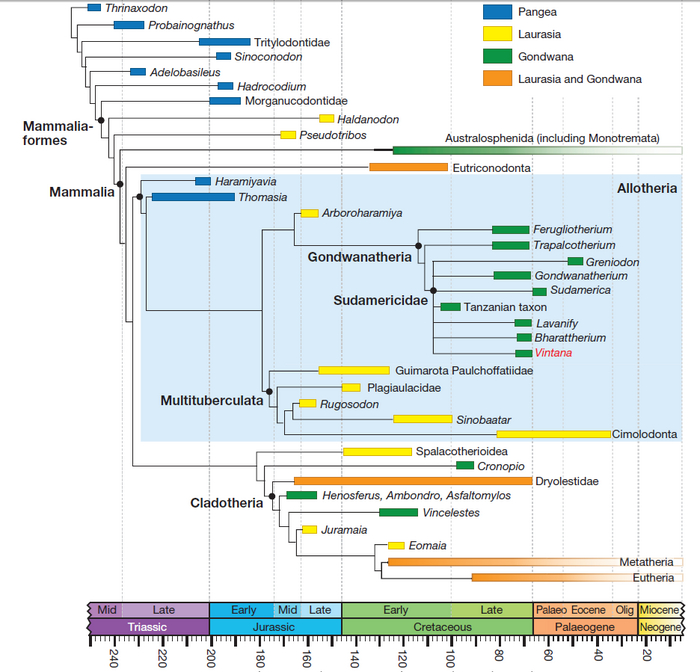
Млекопитающих принято разделять на четыре группы: аллотерии – не до конца изученная, но представляющая для нас интерес, по вопросу живорождения группа млекопитающих, монотремы или однопроходные и собственно терии – сумчатые и плацентарные. В данной статье, мы рассмотрим все четыре группы, проследив эволюцию появления потомства от однопроходных к плацентарным и сравним живорождение у плацентарных, сумчатых и как не странно - аллотериев.

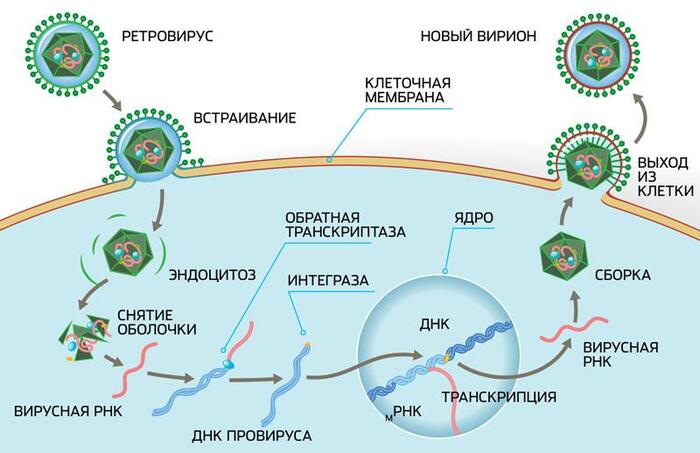
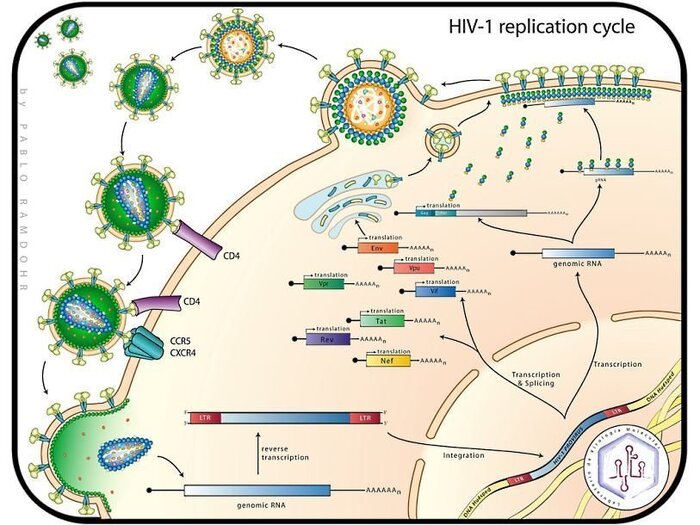
Выше, я упоминал об уникальности живорождения у млекопитающих, которое возникло всего единожды или дважды, завропсиды в этом плане вне конкуренции! Так вот, мало того что оно может примерно совпадать с Триасово-Юрским вымиранием, так и виной вивипарности у млекопитающих стали очень дальние родственники эпидемии охватившей человечество в 80-х годах ХХ века, вызванной микроскопическим, даже не совсем организмом, который нам известен как - вирус иммунодефицита человека, являющийся экзогенным ретровирусом, то есть вирусом распространяющимся горизонтально.

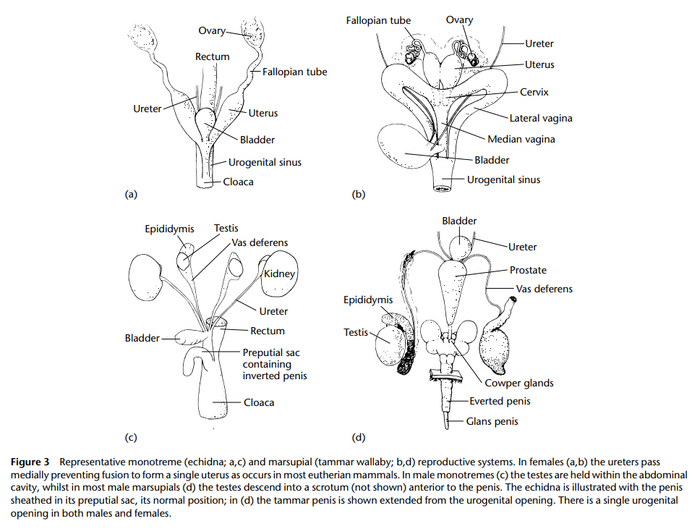
По одной из гипотез, где-то в конце Триасового периода, оставшихся на тот момент в живых синапсид охватил ряд пандемий неопределённых ретровирусных инфекции, но не только экзогенного, а эндогенного характера. Эндогенные ретровирусы, применяют вертикальный способ распространения, а их генетическая информация, стала составной частью всего генома организма животного. Эндогенные ретровирусы, обычно ведут себя как группа генов, находящихся под контролем клетки, а активатором к производству новых вирионов, может стать любой внешний фактор, влияющий на биом, как крупное извержение вулкана, падение метеорита, резкое изменение уровня моря и другие. Судя по всему, именно такое событие, вероятно приведшее к массовому вымиранию около 200 миллионов лет назад и привело к активации некого эндогенного ретровируса, практически у всех млекопитающих, за исключением маммального населения нынешней Австралии, а поражённые инфекцией животные подверглись мутациям, из-за привнесённых в геном животного, генетической информации вируса, вследствие чего, произошел метаморфоз клоаки, и вместо одного общего прохода, образовалось три прохода у особей женского пола и два у мужских особей.

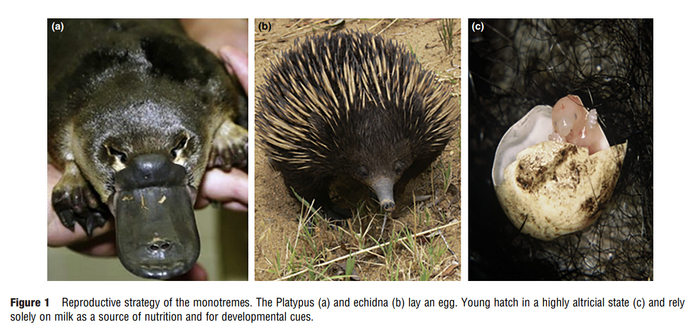
Говорить с точностью о данном метаморфозе не представляется возможным, ввиду неполноты палеонтологических находок, но предположительно, инфекция могла привести в выпадению клоаки наружу и формированием внешних мочеполовых органов в достаточно короткие сроки, в несколько сотен или тысяч поколений, а ввиду того, что речь идёт о некрупных раннемезозойских млекопитающих с быстрым половым созреванием у потомства, данный переход мог сложиться за считанные сотни лет. Австралийской же фауне, удалось каким-то образом избежать заражения инфекцией, толи ввиду наличия иммунитета, толи отделения Австралийского континента от Гондваны в начале Юры, а может быть и по ряду факторов. Так или иначе, мы имеем  на данный момент совершенно не живородящих млекопитающих из группы монотрематы, как утконосы и ехидновые, а так же их ископаемых мезозойских предков с территорий Австралии. Однопроходные млекопитающие, по ряду признаков таковыми не являются и наиболее, напоминают морфологически непосредственных предков млекопитающих – цинодонтов.

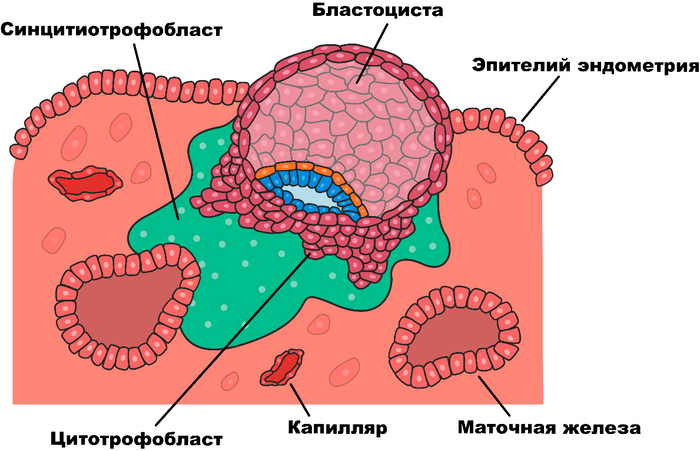
Ну да вернёмся к нашим ретровирусам, собственно, откуда мы знаем об их роли в появлении живорождения у млекопитающих? Всё дело в плаценте, которой обладает каждое живородящее млекопитающее, как сумчатое, так и собственно - плацентарное. Плацента, это довольно любопытное образование, формирующее так называемый синцитий, это когда клетки сливаются между собой в как бы одну большую многоядерную клетку. Плацента выполняет ряд серьёзных функций необходимых для нормального протекания беременности, как то: газообмен, снабжение питательными веществами, выведение продуктов метаболизма плода, секреция ряда гормонов и… плацента умеет подавлять иммунитет матери.

Это требуется для того, что бы организм матери не отторг находящийся внутри него чужеродный объект, в виде будущего чада. Срок беременности у териев гораздо больше, нежели инкубационный период у завропсид и даже однопроходных млекопитающих, ведь нахождение в утробе матери создаёт для развития плода наиболее комфортные условия - температура вокруг всегда одинаковая, кислорода и питательных веществ в достатке, да и ядовитые метаболиты выводятся исправно, а значит можно и не торопится с появлением на свет и спокойно развиваться до приемлемых размеров!

Итак, выделим два основных интересующих нас пункта свойственных плаценте: первое это слившиеся клетки, а второе – подавление иммунитета. Эти свойства удивительно напоминают действие одного из ретровирусных белков – ENV (от английского envelope - оболочка). Конечно же, вирус использует этот белок не для пользы матери и ребёнка, а с целью подавить иммунитет и, заставив клетки слиться, тем самым расширив свои охотничьи угодья и воспользовавшись всеми ресурсы синцития.

В 2000-м году, две группы учёных возглавляемых Джоном Мак-коем из США и Франсуа Малле из Франции, одновременно обнаружили в плаценте человека эндогенный ретровирус, который назвали Human Endogenous Retrovirus-W или HERV-W, белку оболочки вируса было присвоено имя синцитин, так как его функция напрямую связана с образованием синцития в плаценте. Так же обнаружилось, что если отключить ген, отвечающий за производство данного белка, то беременность протекает с патологиями вызванными дисфункцией сосудов. В 2003-м году был открыт ещё один ретровирус участвующий в образовании плаценты - HERV-FRD и его белок, названый синцитином второго типа.

Эти примеры показывают, что в ходе эволюции, млекопитающие научились вступать в симбиоз с ещё недавним смертельным врагом, научившись, в процессе естественного отбора, сохранять полезные функции, привнесённые в организм вирусом. Правда, как говорилось выше, у вируса нет задачи, помочь животному, клетки которого он поражает, а скорее наоборот. Так выяснилось что многие тяжелые заболевания человека, появляются у людей со следами активации эндогенных ретровирусов, это волчанка, сахарный диабет и рассеянный склероз. В случае последнего, подозрение падает на уже упоминавшийся выше синцитин, то есть, белок, без которого вивипарность невозможна, может оказаться причиной тяжелейшего заболевания. Получается, что польза от использования синцитина в образовании плаценты, превысила риск отдалённых негативных последствий, образовав своеобразный компромисс между млекопитающими и ретровирусом.

Теперь рассмотрим некоторые физиологические  изменения у ранних млекопитающих. Как говорилось ранее, вероятно, выкармливать потомство неким секретом, пусть ещё и не полноценным молоком, синапсиды научились ещё задолго до появления у них живорождения, в пользу этого говорит невозможность появления развитого потомства, как у завропсид, из яйца как у однопроходных, следовательно, потомство нуждается в уходе и выкармливании.

Появление живорождения способствовало возможности более длительного вынашивания плода, а так же более эффективно защищало потомство от вероятной гибели до рождения, по сути, за некоторым исключением, сохранение жизни матери равнялось сохранению жизни детей, вплоть до рождения и с большой долей вероятности достижения ими пубертатного периода.

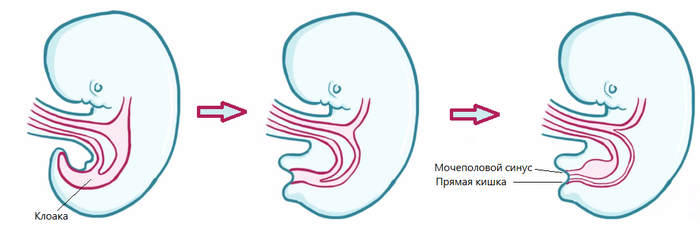
Но что бы появилось живорождение, необходимо избавится от такого органа как клоака, где отходы пищеварительной системы смешиваются с продуктами выделительной системы, сюда же выходят и протоки яйцеводов у женских особей. Так вот, клоака, присутствует абсолютно у всех млекопитающих, правда у большинства на зародышевой стадии, например у человека она исчезает в районе четвёртой-седьмой недели развития плода, после чего анальный канал отделяется и клоака образует мочеполовой синус в котором формируется мочевой пузырь, а так же внешние и внутренние половые органы.

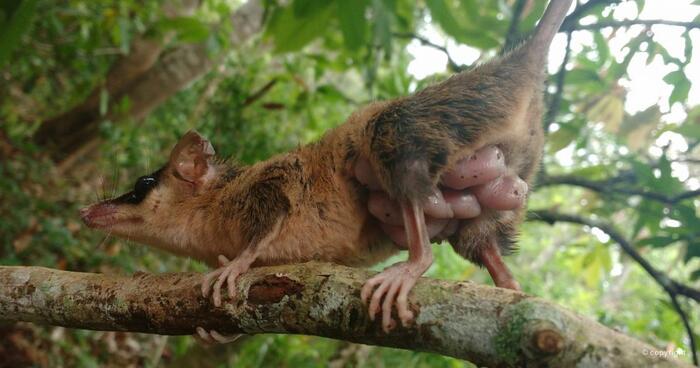
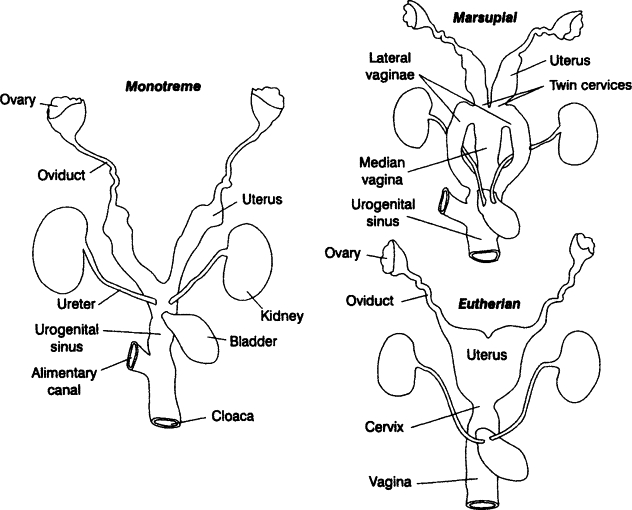
Итак, как уже говорилось выше, на фоне последствий от различных ретровирусных инфекций, клоака у ранних млекопитающих, могла начать трансформацию, разделив анальное отверстие и мочеполовой синус, что привело к образованию матки у женских особей. Точнее, маток сначала было несколько, что можно проследить по анатомии сумчатых и некоторых плацентарных, например: у сумчатых целых две матки и два-три влагалища, позволяющие вынашивать одновременно двоих детёнышей, на время, гормонально затормаживая, развитие младшего, вплоть до появления на свет старшего, при этом самцы сумчатых обладают раздвоенным пенисом, для более эффективного оплодотворения. У плацентарных двойная матка наблюдается у афротериев и ксенантров, а так же у многих грызунов, двурогая матка есть у хищных, насекомоядных, кито-парнокопытных и других эутериев, а вот простая матка присутствует только у приматов и рукокрылых.

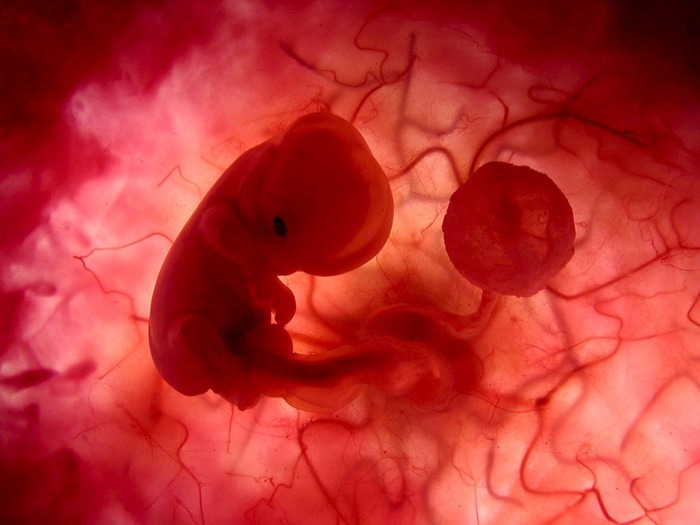
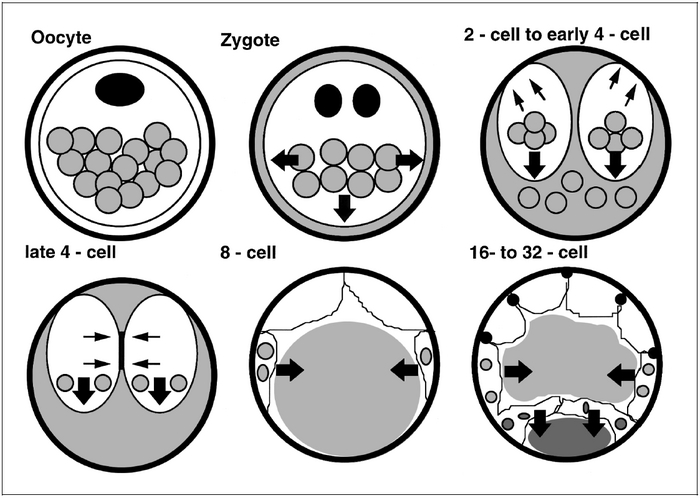
Так же, на примере сумчатых хорошо видна эволюция плаценты, по сути, беременность сумчатых частично напоминает этот процесс у яйце-живородящих завропсид: сначала зародыш начинает своё развитие в яйце внутри организма матери и лишь незадолго до родов вылупляется из яйца и прикрепляется слабой плацентой к эндометрию матки матери и через не очень длительное время происходят роды. Период  имплантации зародыша к стенке матки, является самым опасным для жизни зародыша, около 75% неудачных беременностей у плацентарных приходятся именно на него.

Дело в том, что в момент прикрепления зародыша и начала образования плаценты, происходит воспаление стенки матки и наши добрые друзья Т-лимфоциты, спешат на помощь и с шашкой наголо, мчатся уничтожать непрошеного гостя, именно эта реакция вызывает тот самый токсикоз у беременных. Но тут, в дело вступает ретровирусный белок, который заставляет Т-лимфоциты не только не атаковать свежезакрепившийся плод, но и защищать его от чужеродных элементов. Затем, к моменту родов, воспаление возобновляется и происходит отторжение плаценты маткой, и непосредственно - роды.  Но вот у сумчатых, плацента практически не влияет на иммунный ответ организма, поэтому основную часть своего развития, их детёныш проводит в яйце. Это подтвердили исследования домового опоссума, принадлежащего к сумчатым млекопитающим, опубликованные в 2000 году профессором биологии из Австралии Линни Селвуд.

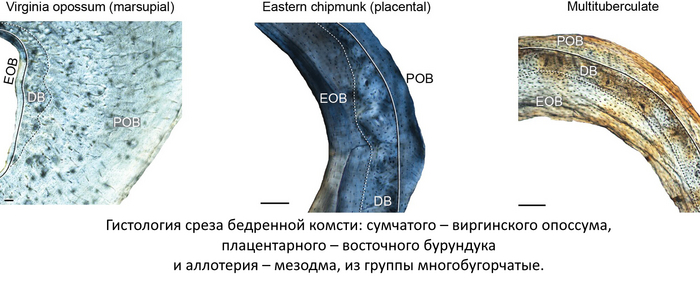
Другое же исследование, проведённое уже в 2022 году, группой американских учёных под руководством Лукаса Вивера, привело результаты сравнения гистологии бедренной  кости трёх групп млекопитающих: сумчатых, плацентарных и аллотериев. Всё дело в том, что компактная костная ткань, делится на два состояния: незрелая костная ткань – формирующаяся у животного в периоды быстрого роста и зрелая костная ткань – образовывающаяся в периоды медленного роста организма и напрямую связанна с периодом молочного вскармливания, который у сумчатых, длится намного дольше чем у плацентарных. Сравнение срезов костей у плацентарных и аллотериев, оказалось во многом схожим по этим параметрам, и разительно отличающимся от таковых у сумчатых, таким образом, данная работа предполагает, что аллотерии – группа, считающаяся более древней, чем сумчатые и плацентарные, вероятно развивалась именно по плацентарному сценарию. Конечно, данное исследование, лишь предполагает плацентарность у аллотериев, но и в таком случае, это ещё один аргумент, в пользу появления живорождения на рубеже Триасового и Юрского периодов.

В итоге, мы имеем удивительный пример эволюционных изменений, произошедших в ходе ряда уникальных мутаций вызванных ретровирусной инфекцией, за весьма недолгое, по меркам эволюции время, около 20-40 миллионов лет, сделавших из яйцекладущих цинодонтов, более развитых – живородящих млекопитающих. И пусть относительно точная дата появления живорождения у синапсид пока ещё не определена, но у учёных уже всё-таки есть вероятные временные границы, когда данное событие могло произойти, а уж насколько ближе это будет к 200 или 160 миллионам лет назад, покажет только время, новые находки и исследования.

Даниил Симонов, «Помни о предках. Палеонтология», ноябрь 2022 г.

https://www.youtube.com/@Memento_maiores

Список источников:

1. N. de Parseval , V. Lazar, J.-F. Casella, L. Benit, T. Heidmann: «Survey of Human Genes of Retroviral Origin: Identification and Transcriptome of the Genes with Coding Capacity for Complete Envelope Proteins», October 2003, DOI: 10.1128/JVI.77.19.10414-10422.2003

2. G. P. Wagner, E. M. Erkenbrack, A. C. Love: «Stress-Induced Evolutionary Innovation: A Mechanism for the Origin of Cell Types», September 2018, DOI:10.20944/preprints201809.0193.v1

3. L. N. Weaver, H. Z. Fulghum, D. M. Grossnickle, W. H. Brightly, Z. T. Kulik, G. P. Wilson Mantilla, M. R. Whitney: «Multituberculate Mammals Show Evidence of a Life History Strategy Similar to That of Placentals, Not Marsupials» September 2022 DOI: 10.1086/720410

4. C. J. Burgin, J. Widness, N. S. Upham: «Introduction to Illustrated Checklist of the Mammals of the World», November 2020, DOI:10.5281/zenodo.4270050

5. N. M. Foley , M. S. Springer, E. C. Teeling: «Mammal madness: is the mammal tree of life not yet resolved?», April 2016, https://doi.org/10.1098/rstb.2015.0140

6. M. C. Wallis, P. D. Waters, M. L. Delbridge, P. J. Kirby, A. J. Pask, F. Grützner: «Sex determination in platypus and echidna: autosomal location of SOX3 confirms the absence of SRY from monotremes. Chromosome Research», November 2007, doi:10.1007/s10577-007-1185-3

7. M. Renfree, G. Shaw: «Reproduction in Monotremes and Marsupials», May 2001 DOI:10.1038/npg.els.0001856

8. R. Motani , D. Jiang, A. Tintori, O. Rieppel, G. Chen: «Terrestrial Origin of Viviparity in Mesozoic Marine Reptiles Indicated by Early Triassic Embryonic Fossils», February 2014, doi:10.1371/journal.pone.0088640

9. D. W. Krause, S. Hoffmann, J. R.Wible, E. C. Kirk, J. A. Schultz, et al: «First cranial remains of a gondwanatherian mammal reveal remarkable mosaicism», November 2014, doi:10.1038/nature13922

10. J. A. Sharp, V. Modepalli, A. K. Enjapoori, H. E. Abud, C. Lefevre, K. R. Nicholas: «Milk: Milk of Monotremes and Marsupials. Reference Module in Food Science», 2016, doi:10.1016/b978-0-08-100596-5.00910-0 

11. L. Selwood: «Marsupial Egg and Embryo Coats», May 1999, doi.org/10.1159/000016733
Показать полностью 18 1
Отличная работа, все прочитано!

Темы

Политика

Теги

Популярные авторы

Сообщества

18+

Теги

Популярные авторы

Сообщества

Игры

Теги

Популярные авторы

Сообщества

Юмор

Теги

Популярные авторы

Сообщества

Отношения

Теги

Популярные авторы

Сообщества

Здоровье

Теги

Популярные авторы

Сообщества

Путешествия

Теги

Популярные авторы

Сообщества

Спорт

Теги

Популярные авторы

Сообщества

Хобби

Теги

Популярные авторы

Сообщества

Сервис

Теги

Популярные авторы

Сообщества

Природа

Теги

Популярные авторы

Сообщества

Бизнес

Теги

Популярные авторы

Сообщества

Транспорт

Теги

Популярные авторы

Сообщества

Общение

Теги

Популярные авторы

Сообщества

Юриспруденция

Теги

Популярные авторы

Сообщества

Наука

Теги

Популярные авторы

Сообщества

IT

Теги

Популярные авторы

Сообщества

Животные

Теги

Популярные авторы

Сообщества

Кино и сериалы

Теги

Популярные авторы

Сообщества

Экономика

Теги

Популярные авторы

Сообщества

Кулинария

Теги

Популярные авторы

Сообщества

История

Теги

Популярные авторы

Сообщества

Недвижимость и ремонт

Теги

Популярные авторы

Сообщества